云杉属研究与系统发育系统学的一个基础逻辑
在教科书里,系统发育树是亲缘关系的写照:支系分开的地方,就是物种分化并各自独立演化的起点。因而,生物多样性科学研究中,一般用系统发育拓扑结构指示物种间亲缘关系、共同祖先。其基础逻辑是,自然选择不改变物种间系统发育拓扑结构关系。或者说,一般假设系统发育结构“自诞生就固定不变”。如果自然选择可以改变物种间的系统发育关系,这等同于说,当前的系统发育树被自然选择改造过,可能既不能代表物种起源时的系统发育关系,也不能表征物种间亲缘关系或共同祖先。云杉属的一项新研究,用同一批物种、同一套数据,换一组基因来建树却得到另一棵树——而这“另一棵树”,恰好与生态位的分布吻合。这引发一个思考,如果系统发育树可以被环境改写,我们还能用它表征亲缘关系、共同祖先吗?
云杉属有约40个种,从欧亚大陆的泰加林,到青藏高原的高山针叶林,再到北美落基山的亚高山带,生态位跨度极大。研究整合了全球37种云杉属类群的转录组数据。串联超矩阵与多物种溯祖方法给出一致结果:云杉属分为四大谱系分支(Clades A–D)。当抽样达到约 275 个位点时,7 个骨干节点的恢复率均趋于100%。这说明,云杉属系统发育主干拓扑结构很稳(图1)。在这个系统发育树上,分布于日本列岛的 Picea torano,与远在青藏高原的丽江云杉(P. likiangensis)聚在同一分支;库页云杉(P. glehnii)、欧洲云杉(P. abies)、青藏高原东缘的云杉(P. asperata)与北美落基山的蓝云杉(P. pungens),也被归入同一分支。这些分支内的物种横跨三个大洲、彼此相隔万里,却在系统发育树上成了“近亲”。从历史生物地理学角度看,这种多样性的分布式样可能源自复杂的扩散历史事件以及偶然过程等因素。
利用不同基因座信息构建的基因树,差别巨大,存在无法忽视的树冲突。近似无偏检验(AU test)显示,34.6%—48.9%的基因座拒绝这棵物种树(图1)。对产生基因树冲突的来源,方差分解得出相对重要性:不完全谱系分选(ILS)27.75%,基因树估计误差14.64%,基因流相关信号7.27%。ILS构成广泛背景,基因流留下局部印记,估计误差放大了个别节点的不确定性。大量分析计算揭示了这个云杉属系统发育树骨架结构的稳定性。
进一步,研究人员把云杉属37个物种的1,204,897个预测蛋白聚为70,031个基因家族。按成员基因统计,核心类别占9.4%,可变类别占89.5%,特有类别占1.1%。再按家族大小的变异系数(CV)筛选,得到5,165个“高变基因家族”,占全部家族的7.4%。所谓高变,是指这些家族在不同物种间的拷贝数波动剧烈——扩张与收缩,是基因组中最灵活的一类变异,也是最容易响应环境变化的一类变异。用这5,165个家族中物种覆盖率超过70%的73个家族的序列重新建树,系统发育树结构出现巨大变化(图2,对应原文图4c)。新的拓扑呈现出清晰的地理结构:样本聚为三个区域类群——青藏高原、东亚,以及由北亚—北美—欧洲组成的全北界;这一格局与历史生物地理分析恢复的区域结构大体一致。换言之,改用“高变基因家族”重建系统发育树后,物种按“共享环境”聚类成组。研究还发现三个区域的功能组成也各有侧重:青藏高原类群富集于胁迫响应、信号转导与低氧响应,检出RAP2.12、HRE1、HRE2等ERF-VII同源基因;东亚类群突出蛋白质代谢与RING/U-box、ATL型E3泛素连接酶;全北界类群则更多关联光合作用、叶绿体功能、细胞壁与苯丙烷代谢。
一种可能的解释是,高变基因家族同样具有更快的周转速度,也更容易被气候“重新洗牌”。气候一变,分布在相似生境、乃至地理相邻区域的物种,被相似的选择压力推向相似的基因家族组成;这种环境选择的塑造性,最终在系统树上表现为“按区域聚类”。由此可以做一个达尔文式的推想:如果把时间尺度拉长,让环境变化持续对云杉属基因组多样性施加选择作用,云杉属的系统发育树很可能会逐步从图1向图2的这棵“高变基因家族树”演变。
对云杉林保护,该研究的结果同样有参考意义:需要守护的不只是物种名录,还有经历选择、杂交并被保留下来的遗传多样性。山地避难所、隐存谱系、区域种源差异,都值得被纳入考量。
相关研究以Picea pan-transcriptomes reveal signatures of complex phylogenetic conflict and adaptation为题发表在Cladistics上,由兰州大学生态学院汝大福教授团队与中国科学院西双版纳热带植物园孙永帅研究员团队合作完成。研究得到国家自然科学基金、中国科学院及云南省有关项目资助。
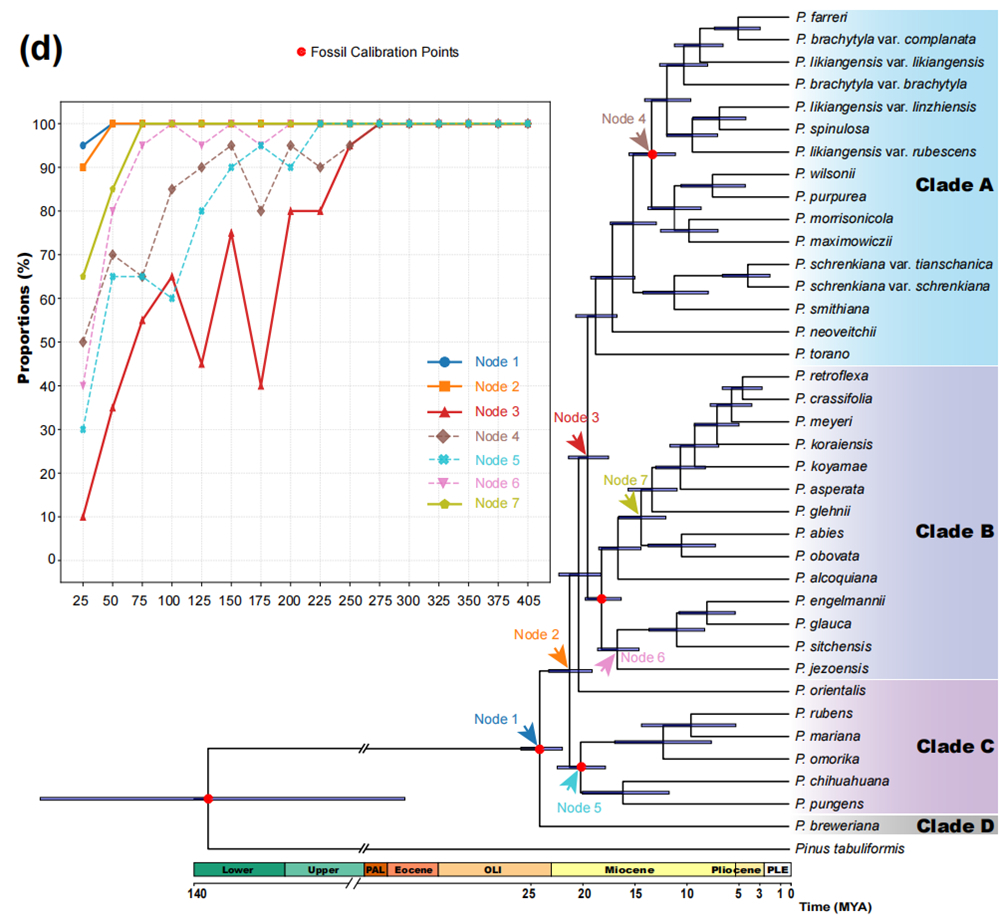
图1:基于低拷贝基因构建的物种树及7个节点随着基因数量增加的恢复情况。
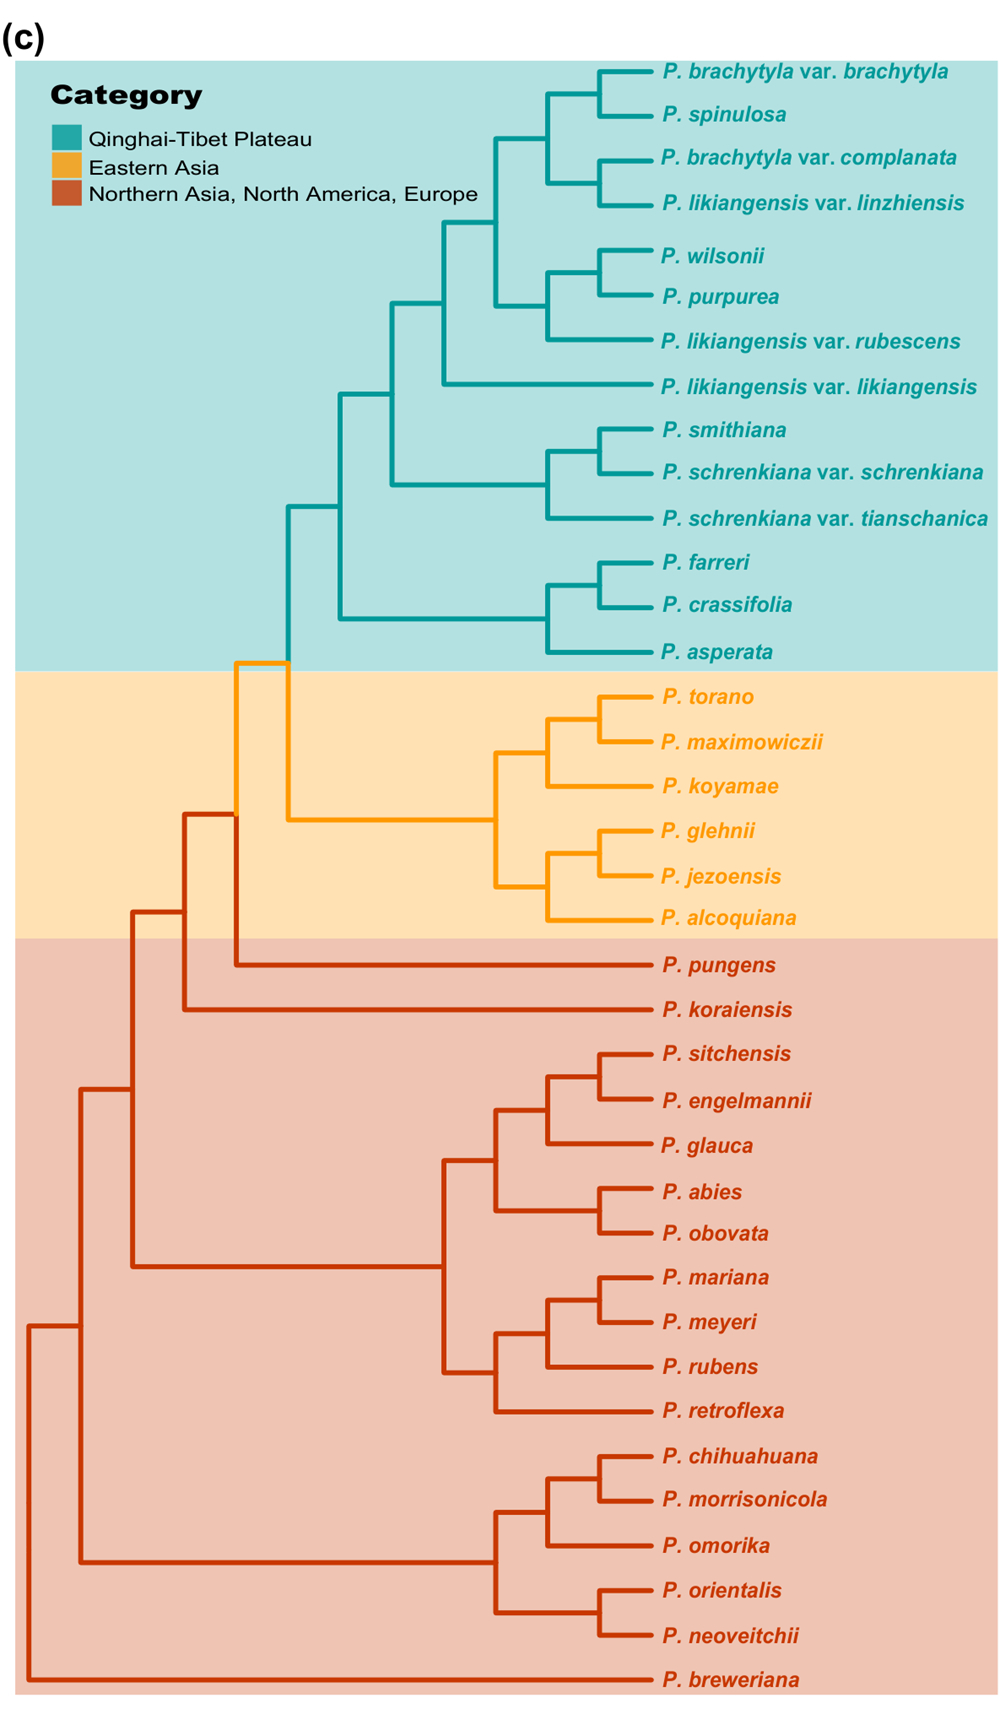
图2:基于高变基因家族序列的系统发育聚类,呈现三个区域类群,对应原文图4c。
拓展思考一下:
把图1和图2的两棵系统树叠在一起,一个令人不安的推论浮现:我们习以为常的“系统发育树=亲缘关系”,可能只是一个未经检验的“假设”。基于DNA或基因序列构建的树,反映的是现有物种在特定分子标记上的遗传聚类。而这种聚类,在漫长的演化过程中,可能被长时间尺度的环境气候变化反复塑造、修改。于是,一棵树所呈现的“谁与谁更近”,未必等于“谁与谁在最初分化时更近”。这个想法看似激进,其实与达尔文最初的忧虑一脉相承。在《物种起源》中,达尔文坚持自然分类应当依据“真正的亲缘关系”而非表面的相似,并专门提醒:趋同演化会让外表相似的类群被误认为近亲。一个半世纪之后,分子数据让我们“自以为终于绕开了表型的欺骗”;但云杉属的研究结果提示,欺骗可能只是换了一副面孔——不是形态的相似,而是基因组/转录组缓慢演变后也形成了相似;选择可能正塑造基因组,并改变系统发育树结构。
在未来,如果这类结果逐渐增多,可能会颠覆生物多样性科学几个支柱学科的基础逻辑。在系统学中,物种树描述物种分化的历史,基因树描述单个基因谱系的合并历史。由高变基因家族构建的拓扑,描述的既不是前者也不是后者,反而是“生态选择的聚类”——不妨称之为“生态树”。三者可以不一致,而且理应不一致。把其中任何一棵直接等同于“亲缘关系”,都会犯错误。但这并不意味着分子系统学失去了意义。恰恰相反,只有承认树的多重性,我们才能提出更好的问题:这棵树基于哪些位点?这些位点受选择影响多大?在什么时间尺度上,生态信号可能覆盖历史信号?
在分类学中,很多分类学家开展工作,是在分子系统发育的基础上,重新梳理分类检索表。尝试研发一套新的形态学分类依据,让形态分类结果与分子系统发育结果一致。这样就能产生一种“形态特征的系统发育保守性”,由此得到“共衍征”。但如果自然选择或环境过滤能够改变系统发育结构,当前的系统发育树形很可能不同于物种最初分化时的树形;依据现有系统发育制作分类检索表,将可能误导我们对生物性状演化过程的理解。
在生态学中,生态位的系统发育保守性被广泛接受,也就是,亲缘关系更近的物种或类群、或者具有更近共同祖先的支系,往往具有更相似的生态位,进而它们在系统树上形成聚类关系。但在研究中,我们一般使用分子系统发育推断物种间的共同祖先节点或分支关系,继而“发现”共同祖先对近缘物种的生态位相似现象有很高的解释力。但是,真找到了共同祖先吗?分子系统发育分析产生的进化树,真的能反映共同祖先吗?如果物种间分支关系处在不断演变中,分支关系可能被环境条件等因子大规模改造,终而使得处在同一个环境条件下的物种具有更相似的基因组、转录组。最终,原本的远缘物种对,被改造至同一个分支中,产生“分子系统树上的共同祖先节点”。这样的研究推理,会不会是因果倒置、“把现象当机制”?生态位的系统发育保守性,是不是假象?类似地,代谢组分的系统发育保守性,会不会是假象?
在生物地理学中,分子系统发育和生物地理分布式样的一致性,常被用来支持地理结构驱动生物多样性的演化、物种分化。如果现在的系统树,被自然选择严重改造过,很多物种在系统树上的位置出现过明显的变化,那么这种进化树与地理分布的一致性,还有证据作用吗?地理结构驱动物种分化、分支分化的真正机制是什么?